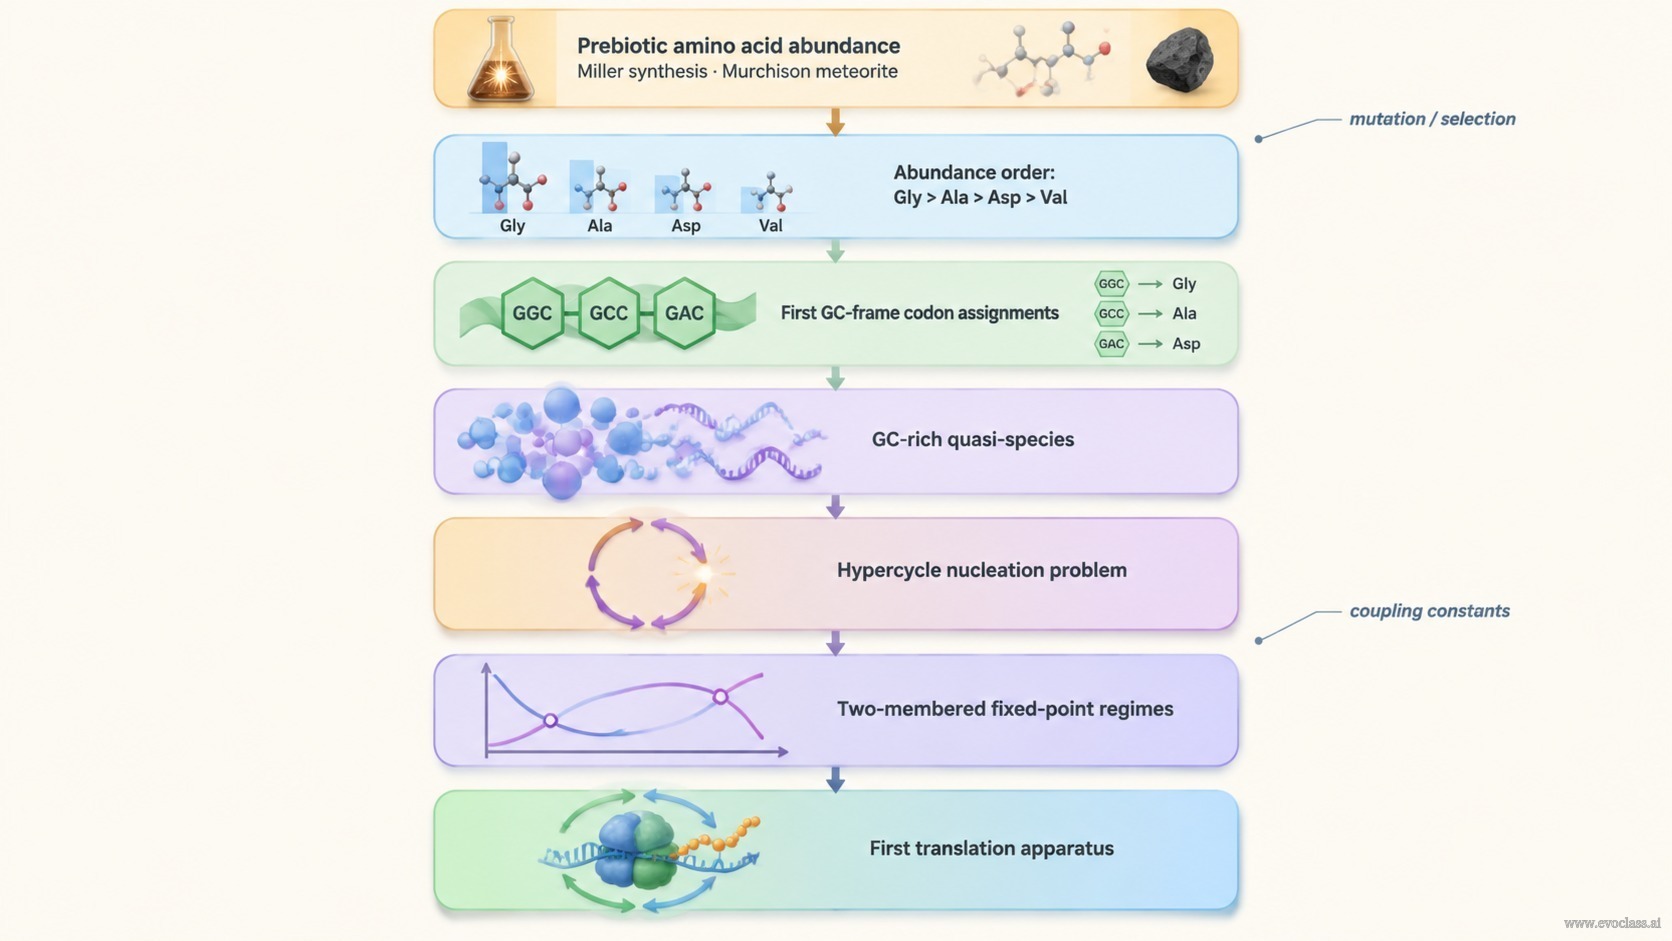
El origen de la traducción suele imaginarse como el ensamblaje repentino de un ribosoma. Esta diapositiva toma otra ruta: parte de la abundancia prebiótica de aminoácidos y se pregunta de qué organización de orden superior debió formar parte el primer aparato de traducción.
De la química prebiótica a un primer alfabeto
La síntesis prebiótica simulada (experimentos tipo Miller) y el inventario orgánico del meteorito de Murchison convergen en una familia restringida de aminoácidos alifáticos. En lugar de una mezcla uniforme, los rendimientos y las abundancias en el meteorito están fuertemente sesgados: la glicina domina, seguida de la alanina, el ácido aspártico y la valina. Este sesgo es la materia prima de la que podría extraerse un primer alfabeto genético.
El orden de abundancia y los primeros codones del marco GC
El orden Gly > Ala > Asp > Val se utiliza para ordenar las primeras asignaciones de codones del marco GC. Los codones formados por G y C se asignan primero a los aminoácidos más simples y abundantes, de modo que la abundancia química y el patrón de codificación temprano quedan alineados. Bajo esta lectura, el sistema de codificación más antiguo es uno rico en GC, y sus asignaciones son consecuencia de la disponibilidad y no del azar.
El problema de nucleación de un hiperciclo
Un hiperciclo se comporta de manera distinta a un único replicador autocatalítico. Un replicador puede, en principio, iniciarse a partir de una sola copia molde; una red cíclica no, porque cerrar el bucle requiere que todos sus miembros estén presentes al mismo tiempo. El primer aparato de traducción no es, por tanto, una invención molecular aislada. Tiene que ensamblarse gradualmente a partir de una cuasi-especie rica en GC, con la mutación y la selección añadiendo y refinando sus componentes paso a paso hasta que el ciclo se cierra.
Puntos fijos del hiperciclo de dos miembros
El análisis de puntos fijos de un hiperciclo de dos miembros muestra que el resultado depende de las constantes de acoplamiento relativas que vinculan a los miembros. Aparecen tres regímenes cualitativos: la competencia directa, en la que un miembro supera al otro; la selección de cualquiera de los miembros, según las condiciones iniciales; y la estabilización hipercíclica mutua, en la que cada miembro fortalece al otro. Solo el último régimen sustenta un aparato acoplado a la traducción, porque es el caso en que la replicación de ARN y la síntesis de péptidos se refuerzan mutuamente en lugar de competir.
La traducción como umbral, no como invención
La imagen que emerge es que el primer aparato de traducción es un umbral en un sistema hipercíclico que vincula la replicación de ARN, la síntesis de péptidos y el cierre catalítico. La pregunta guía es XI. ¿Cómo iniciar la traducción? La hoja de ruta anterior la responde: el punto de partida es la abundancia química, y el punto final es un ciclo autorreforzado alcanzado mediante la mutación, la selección y un acoplamiento suficiente.
Aminoácidos prebióticos y el primer aparato de traducciónUna hoja de ruta por etapas conecta la abundancia de aminoácidos primordial (síntesis tipo Miller y datos del meteorito de Murchison) con el primer aparato de traducción. Pasa por el orden de abundancia Gly > Ala > Asp > Val, las primeras asignaciones de codones del marco GC, una cuasi-especie rica en GC, el problema de nucleación de un hiperciclo y los regímenes de punto fijo de un ciclo de dos miembros, hasta desembocar en un aparato de traducción sostenido por la replicación de ARN, la síntesis de péptidos y el cierre catalítico.